Mammouth laineux
Mammuthus primigenius
Le Mammouth laineux (Mammuthus primigenius) est une espèce éteinte de la famille des éléphantidés ayant vécu dans les steppes d'Eurasie et d'Amérique du Nord durant le Pléistocène et, pour ses derniers représentants, au…
- Règne
- Animalia
- Embranchement
- Chordata
- Classe
- Mammalia
- Ordre
- Proboscidea
- Famille
- Elephantidae
- Genre
- Mammuthus
- Espèce
- Mammuthus primigenius
Portrait
Le Mammouth laineux (Mammuthus primigenius) est une espèce éteinte de la famille des éléphantidés ayant vécu dans les steppes d'Eurasie et d'Amérique du Nord durant le Pléistocène et, pour ses derniers représentants, au cours de l'Holocène, il y a seulement 4 000 ans, durant l'Antiquité égyptienne. Le genre Mammuthus était apparu avec Mammuthus subplanifrons au début du Pliocène.
Le Mammouth laineux a divergé du Mammouth des steppes il y a environ 400 000 ans dans l'est de l'Asie. Son plus proche parent actuel est l'éléphant d'Asie. L'apparence et le comportement de cette espèce sont parmi les mieux étudiés pour un animal préhistorique du fait de la découverte de carcasses prises dans les glaces en Sibérie et en Alaska, ainsi que de squelettes, de dents, de contenu stomacal, de défenses et de représentations sur les parois des grottes. Des traces fossilisées de mammouths ont été trouvées en Asie bien avant que les Européens n'en prennent connaissance au XVIIe siècle. Les origines de ces fossiles ont fait l'objet de nombreux débats, et on les a souvent associés à des restes de créatures légendaires. Le mammouth a été identifié comme une espèce éteinte d'éléphant par Georges Cuvier en 1796.
Le Mammouth laineux avait une taille relativement proche de celle de l'éléphant d'Afrique actuel. Les mâles atteignaient une hauteur aux épaules comprise entre 2,7 et 3,4 m et pesaient jusqu'à 6 tonnes. La taille des femelles variaient entre 2,6 et 2,9 m pour un poids qui pouvait atteindre 4 tonnes. Un nouveau-né pesait environ 90 kg.
Le Mammouth laineux était bien adapté à l'environnement froid de la dernière période glaciaire. Il était couvert de fourrure, avec de longs poils de jarre et une sous-couche de poils de bourre. La couleur de sa fourrure était plus ou moins sombre. Les oreilles et la queue étaient courtes, limitant les risques de gelure et de déperdition de chaleur. Il avait de longues défenses incurvées, et quatre molaires qui étaient remplacées six fois au cours de la vie d'un individu. Son comportement était similaire à celui des éléphants modernes, et il utilisait ses défenses et sa trompe pour manipuler des objets, se battre et s'alimenter. L'alimentation du Mammouth laineux était principalement composée d'herbe et de cypéracées. Les animaux pouvaient probablement atteindre l'âge de 60 ans.
Le Mammouth laineux était contemporain des premiers Hommes, qui utilisaient ses os et ses défenses pour faire des outils, des objets décoratifs ou des habitations, et cette espèce était également chassée pour la nourriture. Elle a disparu de son aire de répartition continentale à la fin du Pléistocène il y a 10 000 ans, certainement du fait du changement climatique et de la réduction de son habitat qui en a découlé, voire de la chasse par l'Homme. Des populations isolées ont survécu sur l'île Saint-Paul jusqu'à il y a 6 400 ans et sur l'île Wrangel jusqu'à il y a 4 000 ans. Au même moment, en Egypte, la pyramide de Khéops et le sphinx sont bâtis sur le plateau de Gizeh. Après son extinction, les Hommes ont continué à utiliser son ivoire, une tradition qui se poursuit encore de nos jours. La possibilité de récréer cette espèce par clonage a été évoquée à plusieurs reprises, mais cela semble improbable du fait du stade de dégradation important du matériel génétique retrouvé à ce jour.
Dénominations
À la suite de l'identification de Cuvier, Johann Friedrich Blumenbach donne au Mammouth laineux son nom scientifique, Elephas primigenius, en 1799, le plaçant dans le même genre que l'éléphant d'Asie. Ce nom signifie en latin « premier éléphant ». Cuvier utilise le nom Elephas mammonteus quelques mois plus tard, mais c'est le premier nom qui est utilisé par la suite. En 1828, Joshua Brookes utilise le nom Mammuthus borealis pour désigner les fossiles de mammouths laineux de sa collection qu'il met en vente, créant ainsi un nouveau nom de genre. On ne sait pas réellement d'où provient le mot « mammouth ». Selon l'Oxford English Dictionary, il viendrait d'un ancien mot mansi, mēmoŋt signifiant « corne de la terre ». Cela pourrait être également une déclinaison de mehemot, le mot arabe pour désigner le « Béhémoth », monstre décrit dans le livre de Job. Une autre origine possible est l'estonien, où maa signifie « terre », et mutt désigne la « taupe ». Le naturaliste Pallas appuie cette hypothèse sur le fait que certaines légendes sibériennes narraient l'existence d'une taupe géante vivant sous la terre, et que le parallèle aurait été fait avec les fossiles de mammouths retrouvés sous terre. Le mot « mammouth » a été utilisé pour la première fois en Europe à la fin du XVIIe siècle, alors que les termes « mamant » ou « mamont » étaient jusque-là largement usités pour désigner les animaux auxquels appartenaient les fossiles découverts en Sibérie. Thomas Jefferson, qui s'intéressait à la paléontologie, est en partie responsable de la transformation du mot mammouth d'un nom pour décrire les éléphants préhistoriques en un adjectif pour qualifier quelque chose de particulièrement grand. Ainsi la première utilisation connue du mot « mammouth » comme adjectif est une description d'un fromage (le « Cheshire Mammoth Cheese ») faite par Jefferson en 1802.
Description
Apparence générale
L'apparence du Mammouth laineux est probablement la mieux connue de tous les animaux préhistoriques car plusieurs individus aux tissus préservés ont été retrouvés pris dans la glace. De plus cet animal a été très fréquemment représenté par les premiers hommes. Les mâles adultes pouvaient atteindre une taille aux épaules de 2,7 à 3,4 m et pesaient jusqu'à 6 tonnes. Il est presque aussi grand que les éléphants d'Afrique modernes, qui atteignent communément 3 à 3,4 m, mais plus petit que les espèces de mammouths plus primitives tels que le Mammouth méridional (Mammuthus meridionalis) et le Mammouth des steppes (Mammuthus trogontherii), ou que son contemporain le Mammouth de Colomb (Mammuthus columbi). La raison pour cette taille inférieure n'est pas connue. Les femelles mesuraient en moyenne 2,6 à 2,9 m de hauteur aux épaules et étaient un peu plus frêles que les mâles, pesant au plus 4 tonnes. Un nouveau-né pesait environ 90 kg. Ces tailles sont estimées à partir de celles des éléphants modernes de taille similaire. Peu de spécimens retrouvés congelés avaient leurs organes génitaux intacts, et le sexe est souvent déterminé à partir du squelette. La meilleure indication pour le déterminer est ainsi la ceinture pelvienne, car l'ouverture qui permet le passage du nouveau-né est toujours plus large chez les femelles que chez les mâles. Bien que les mammouths de l'île de Wrangel aient été plus petits que ceux du continent, leur taille était variable et ils n'étaient pas suffisamment petits pour être qualifiés de « nains ». Il a été dit que les dernières populations de mammouths laineux avaient décliné en taille et présentaient un dimorphisme sexuel plus marqué, mais cela a été contredit par une étude de 2012.
Les mammouths laineux présentent diverses adaptations au froid, dont la plus notable est la robe de fourrure qui couvrait l'intégralité de son corps. Par ailleurs leurs oreilles étaient nettement plus petites que celles des éléphants modernes, mesurant environ 38 cm de long et entre 18 et 28 cm de large. L'oreille d'un jeune de 6 à 12 mois retrouvé congelé, « Dima », mesurait moins de 13 cm de long. Cette petitesse des oreilles permettait de limiter l'exposition au froid et donc les déperditions de chaleur ou les gelures. Pour les mêmes raisons, la queue était courte, mesurant seulement 36 cm chez le « Berezovka mammoth ». La queue comprenait 21 vertèbres, tandis que celle des éléphants modernes en présente de 28 à 33. Tous ces points illustrent typiquement la règle d'Allen.
Leur peau n'était pas plus épaisse que celle des éléphants, entre 1,25 et 2,5 cm. Ils disposaient d'une couche de graisse pouvant atteindre 10 cm d'épaisseur sous la queue, qui les aidait à conserver leur chaleur corporelle. Les mammouths laineux avaient de larges lambeaux de peau sous leur queue qui couvraient l'anus, une caractéristique que l'on retrouve chez les éléphants modernes.
Parmi les autres caractéristiques dépeintes sur les parois des grottes, on note une grande et haute tête, et un dos incliné avec des épaules très hautes. Cette forme résulte des vertèbres du dos dont la longueur diminue du devant vers l'arrière. Ces caractéristiques ne sont pas visibles chez les jeunes, qui ont un dos convexe comme les éléphants d'Asie. Les peintures rupestres ont également permis d'identifier une caractéristique de la trompe des mammouths qui a pu être confirmée par la découverte d'un spécimen pris dans la glace en 1924 et surnommé « Middle Kolyma mammoth », préservé avec une trompe intacte. À la différence de l'extrémité de la trompe des éléphants modernes, le « doigt » supérieur de l'extrémité de la trompe des mammouths a un lobe pointu et allongé mesurant 10 cm, tandis que le « pouce » inférieur mesure 5 cm et est plus large. La trompe de « Dima » mesurait 76 cm de long, tandis que celle du « Mammouth de Lyakhov » (dont le squelette est exposé au Muséum national d'histoire naturelle à Paris) faisait 2 m de long. La trompe très bien préservée d'un spécimen juvénile surnommé « Yuka » a été décrite en 2015 ; elle présentait une excroissance de chair un tiers au-dessus de son extrémité. Contrairement au reste de la trompe qui a une section de forme ovale, cette partie a une section ellipsoïdale et un diamètre deux fois plus important. Cette caractéristique a été retrouvée chez deux autres spécimens de différents sexes et âges.
Fourrure
La fourrure est composée d'une couche extérieure de « poils de jarre », qui mesuraient 3…
Paléobiologie
Comportement
Les mammouths laineux adultes pouvaient efficacement se défendre des prédateurs avec leurs défenses, leur trompe et leur taille. Mais les jeunes et les adultes affaiblis étaient vulnérables à des animaux chassant en meute comme les loups, les humains, les hyènes des cavernes et les grands félins. Les défenses étaient peut-être également utilisées pour des combats entre mammouths, pour défendre un territoire ou pour convoiter un partenaire. Les grandes défenses des mâles leur servaient ainsi peut-être à attirer les femelles et intimider leurs rivaux. Du fait de leur forme fortement incurvée, elles n'étaient pas adaptées pour empaler, mais plutôt pour frapper, comme le montrent certaines blessures retrouvées sur des omoplates de fossiles. Les très longs poils de sa queue permettaient certainement de compenser la petite taille de cette dernière, le rendant capable de s'en servir pour chasser les mouches, comme le font les éléphants modernes. Comme chez ces derniers, la trompe musculeuse et sensitive était utilisée comme un membre et avait diverses fonctions. Elle était utilisée pour manipuler des objets, et lors des interactions sociales. Le pied bien préservé du mammouth de Yukagir a permis d'observer que la plante des pieds présentait plusieurs craquelures qui lui permettait de mieux s'accrocher aux surfaces lorsque l'animal marchait. Comme les éléphants modernes, les mammouths laineux marchaient sur leurs orteils, et avaient de grands coussinets charnus sous les orteils.
Comme les éléphants modernes, les mammouths laineux étaient vraisemblablement très sociaux et vivaient au sein de groupes familiaux matriarcaux. Cette théorie a été émise à partir de peintures rupestres représentant des groupes et de fossiles retrouvés ensemble. C'est pourquoi il est probable que le comportement social de ces animaux était proche de celui des éléphants modernes. On ne sait pas combien de mammouths vivaient au même endroit au même moment, car les dépôts de fossiles sont souvent des accumulations d'individus morts sur une longue période de temps. Ce nombre variait certainement selon la saison ou divers éléments du cycle de vie de ces animaux. Les éléphants modernes forment de grands troupeaux, parfois composés de plusieurs groupes familiaux, et ces troupeaux peuvent comporter des milliers d'animaux migrant ensemble. Les mammouths ont pu former de grands troupeaux très fréquemment, car ce comportement est souvent plus facile à mettre en œuvre dans des milieux ouverts que dans des milieux forestiers. Des traces laissées par un troupeau de mammouths laineux il y a entre 11 300 et 11 000 ans et retrouvées dans le Saint Mary Reservoir au Canada, ont montré que ce groupe comportait dans ce cas des nombres similaires d'individus adultes, subadultes et juvéniles. Les adultes faisaient des enjambées de 2 m, et les jeunes couraient pour rester au contact.
Le mammouth laineux était probablement le membre le plus spécialisé de la famille des Elephantidae. Il avait une lipopexie (stockage de graisse) au niveau de son cou et de son garrot, en prévision de périodes où la disponibilité en nourriture serait insuffisante comme en hiver, et ses trois premières molaires croissaient plus rapidement que chez les jeunes éléphants modernes. On pense que l'expansion identifiée sur la trompe de « Yuka » et d'autres spécimens servait de « gant en fourrure » ; l'extrémité de la trompe n'était pas couverte de fourrure, mais était utilisée pour manger durant l'hiver, et aurait pu être réchauffée en étant glissée dans cette expansion. On imagine aussi que cette extension aurait pu être utilisée pour faire fondre de la neige afin d'approvisionner l'animal en eau, car la faire fondre directement dans sa gueule aurait pu perturber l'équilibre thermique de l'animal. Comme chez le renne et le bœuf musqué, l'hémoglobine du mammouth laineux était adaptée au froid, avec trois mutations permettant d'améliorer la libération de l'oxygène dans le corps et d'éviter le gel. Cette caractéristique aidait peut-être les mammouths à vivre à de hautes latitudes.
Dans une étude de 2015, des séquences de génome de très bonne qualité provenant de trois éléphants d'Asie et de deux mammouths laineux ont été comparées. Approximativement 1,4 million de différences au niveau des nucléotides d'ADN ont été trouvées entre mammouths et éléphants, qui affectent les séquences de plus de 1 600 protéines. Des différences ont été notées au niveau des gènes sur plusieurs aspects de ph…
Distribution et habitat
L'habitat principal du mammouth laineux était la steppe à mammouths ou steppe-toundra. Cet environnement se rencontrait à travers le nord de l'Asie, diverses parties de l'Europe et la partie septentrionale de l'Amérique du Nord durant la dernière ère glaciaire. Il se rapprochait des steppes herbeuses de la Russie actuelle, mais comportait une flore plus diverse, abondante, et qui poussait plus rapidement. Des herbes, des carex, des buissons étaient présents, et parfois quelques arbres isolés, notamment dans les régions les plus au sud. Cet habitat n'était pas dominé par la glace et la neige, comme on le croit communément, car ces régions étaient protégées par un anticyclone. Le mammouth laineux partageait son habitat avec d'autres herbivores comme le Rhinocéros laineux, des chevaux sauvages et le bison. Une étude de 2014 a conclu que les plantes herbacées non graminoïdes étaient plus importantes dans les steppes que ce que l'on pensait auparavant, et qu'elles représentaient une importante source de nourriture pour la mégafaune de l'ère glaciaire.
L'aire de répartition du mammouth laineux correspondait donc à la présence de ces steppes à mammouths, et s'étendait sur toute l'Eurasie septentrionale et l'Amérique du Nord. Le spécimen de mammouth laineux trouvé le plus au sud était dans la province de Shandong en Chine et datait d'il y a 33 000 ans. En Europe le spécimen le plus méridional a été retrouvé dans la dépression de Grenade en Espagne et datait de la même époque. Le mammouth laineux a également été ponctuellement présent au Japon il y a entre 20 000 ans et 40 000 ans. Leur répartition variait suivant les ères glaciaires. Lorsque le climat s'adoucissait, le mammouth laineux gagnait les régions les plus septentrionales de l'Europe, comme les plaines scandinaves et la Sibérie, comme lors de la dernière période interglaciaire il y a entre 130 000 et 114 000 ans. Il redescendait dans l'Europe continentale, les parties plus méridionales de la Russie et le nord de la Chine lors des glaciations. Durant la période du Dryas récent, les mammouths laineux se sont brièvement étendus dans le nord-est de l'Europe, après quoi la population continentale s'est éteinte.
Originaire d'Eurasie, le mammouth laineux a gagné l'Amérique du Nord via le détroit de Béring il y a 100 000 ans. Les populations nord-américaines ont ainsi rejoint une autre espèce de mammouth, le mammouth de Colomb, et des fossiles de ces deux espèces ont été trouvés ensemble dans quelques endroits d'Amérique du Nord, comme à proximité de l'actuelle Hot Springs dans le Dakota du Sud où leurs aires de répartition se superposaient. On ne sait pas si les deux espèces étaient sympatriques et vivaient ici simultanément, ou si les mammouths laineux ne pénétraient dans ces terres que pendant les périodes où les mammouths de Colomb n'y étaient pas. Des travaux récents sur des isotopes stables chez des spécimens de mammouths de Sibérie et du Nouveau Monde ont montré qu'il y avait aussi des différences dans les conditions climatiques de chaque côté du détroit de Béring, la Sibérie étant plus uniformément froide et sèche tout au long du Pléistocène tardif. Les deux populations ont divergé en deux sous-espèces distinctes, comme ont pu le montrer des études ADN récentes.
Une analyse génétique de 2008 a montré que certains mammouths laineux, qui étaient arrivés en Amérique du Nord en provenance d'Asie via le détroit de Bering, ont effectué une migration inverse il y a environ 60 000 ans à la faveur d'une période de refroidissement. Après un temps de cohabitation ces mammouths nord-américains ont remplacé la population asiatique il y a 40 000 ans, peu de temps avant que l'espèce ne disparaisse complètement. Cette version est confirmée par une étude ADN de 2008 qui a montré qu'il y avait deux groupes différents de mammouths laineux : un qui s'est éteint il y a 45 000 ans et un autre il y a 12 000 ans. Les deux groupes semblent avoir suffisamment divergé pour qu'on les considère comme deux sous-espèces différentes. Le groupe qui s'est éteint le plus précocement vivait dans une zone limitée comprise entre les rivières Léna et Kolyma, dans le centre de la Sibérie Arctique, tandis que l'autre avait une aire de répartition plus étendue.
Classification et histoire évolutive
Classification
Des fossiles de diverses espèces d'éléphants disparues sont connus des Européens depuis des siècles, mais ils les voyaient, s'appuyant sur des récits bibliques, comme des restes de créatures légendaires comme le Béhémoth ou les géants. Certains faisaient également l'hypothèse qu'il s'agissait de fossiles d'éléphants modernes qui avaient été amenés en Europe durant la République romaine, comme les éléphants de guerre d'Hannibal et Pyrrhus Ier, ou d'animaux qui avaient divagué vers le nord.
Les premières traces fossilisées de mammouth laineux étudiées par des scientifiques européens l'ont été par Hans Sloane en 1728 et comprenaient des dents et défenses venant de Sibérie. Sloane a été le premier à identifier que ces fossiles pouvaient provenir d'un éléphant. Sloane trouva une explication biblique à la présence d'éléphants dans l'Arctique, considérant qu'ils avaient été ensevelis ici durant le Déluge, et que la Sibérie avait eu autrefois un climat tropical avant de grands changements climatiques. D'autres auteurs ont interprété les conclusions de Sloane différemment, indiquant que le courant avait dû transporter les carcasses d'éléphants des tropiques vers l'Arctique. Les écrits de Sloane étaient basés sur des descriptions faites par des voyageurs et quelques os collectés en Sibérie et en Grande-Bretagne. Il discute avant tout sur la possibilité que ces restes soient ceux d'éléphants, mais ne tirent pas de conclusion claire. En 1738, Johann Philipp Breyne indique que les fossiles de mammouths correspondent à une certaine forme d'éléphants. Cependant, il ne sait pas expliquer comment un animal tropical peut se rencontrer dans des régions froides comme la Sibérie, et suggère qu'ils ont dû y être transportés durant le Déluge. En 1796, l'anatomiste français Georges Cuvier est le premier à identifier les fossiles de mammouth laineux comme une nouvelle espèce, distincte des éléphants modernes. Il indique par ailleurs que cette espèce est éteinte et n'existe donc plus à l'heure actuelle, un concept qui n'est alors pas accepté par tous.
La taxonomie des éléphants disparus se complique au début du XXe siècle, et en 1942 un ouvrage posthume d'Henry Fairfield Osborn sur les Proboscidea est publié, dans lequel il utilise différents noms de taxon qui avaient auparavant été proposés pour les espèces de mammouths, et remplace notamment Mammuthus par Mammonteus, considérant que le premier nom n'avait pas été publié de manière valide. Cette taxonomie est ensuite simplifiée par différents chercheurs au cours des années 1970, et toutes les espèces sont alors placées dans le genre Mammuthus et les écarts morphologiques notés pour différencier les espèces sont interprétés comme des variations intraspécifiques. Osborn choisit deux molaires (trouvées en Sibérie et dans l'Osterode) de la collection de Blumenbach à l'université de Göttingen comme spécimen lectotype du mammouth laineux, puisqu'aucun holotype n'avait été désigné du temps de Blumenbach. Véra Gromova a ensuite proposé que la première d'entre elles soit considérée comme le lectotype tandis que la suivante serait le paralectotype. Ces deux molaires ont été perdues dans les années 1980, et le « mammouth de Taimyr », plus complet, découvert en Sibérie en 1948, a été proposé comme spécimen néotype en 1990. La validité du nom générique Mammuthus et la désignation de l'espèce type E. primigenius ont également été largement débattues à cette époque. La molaire paralectotype (spécimen GZG.V.010.018) a depuis été retrouvée dans la collection de l'université de Göttingen, identifiée par comparaison avec l'illustration qu'Osborn en avait fait.
Évolution
Les premiers membres connus des proboscidiens, le clade qui comprend les éléphants modernes, existaient il y a environ 60 millions d'années autour de l'ancien océan Téthys. Leurs plus proches parents sont les siréniens (dugongs et lamantins) et les hyracoïdes (un ordre de petits mammifères herbivores appelés damans). La famille des Elephantidae existe depuis six millions d'années en Afrique et inclut les éléphants modernes et les mammouths. Parmi plusieurs clades aujourd'hui éteints, le mastodonte (Mammut) est un lointain parent des mammouths, et fait partie d'une famille différente, celle des Mammutidae, qui a divergé 25 millions d'années avant que les mammouths n'évoluent. Le cladogramme suivant montre le placement du genre Mammuthus parmi d'autres.
Phylogénie des genres d'éléphants ainsi que d'autres familles proches…
Génome
En 2005, les chercheurs assemblent le profil complet du génome mitochondrial du mammouth laineux, qui leur permet d'étudier les relations évolutives entre les mammouths et les éléphants d'Asie (Elephas maximus). Une étude de 2015 sur cet ADN a confirmé que l'éléphant d'Asie était le plus proche parent encore existant du mammouth laineux. L'éléphant d'Afrique (Loxodonta africana) a divergé de ce clade il y a environ 6 millions d'années, soit à peu près au même moment que les chimpanzés ont divergé des Hommes. Avant la publication du génome de Neandertal, plusieurs chercheurs pensaient que le premier génome nucléaire d'une espèce éteinte complètement séquencé serait celui du mammouth. Une étude de 2010 confirme ces relations, et suggère que les lignées des mammouths et des éléphants d'Asie ont divergé il y a 5,8 à 7,8 millions d'années, tandis que les éléphants d'Afrique ont divergé d'un ancêtre commun il y a 6,6 à 8,8 millions d'années. En 2008, la plupart de l'ADN chromosomique du mammouth laineux était séquencé. Les analyses ont montré que le mammouth laineux et l'éléphant d'Afrique avaient 98,55 % à 99,40 % de leur patrimoine génétique en commun. Le génome nucléaire du mammouth laineux a été séquencé à partir de l'ADN issu des follicules pileux d'un mammouth de 20 000 ans retrouvé dans le permafrost, et d'un autre mort il y a 60 000 ans. En 2012, les protéines ont été identifiées de manière fiable pour la première fois, à partir d'un mammouth laineux de 43 000 ans.
En 2024, la peau d'une femelle morte il y a 52 000 ans, exceptionnellement bien conservée, révèle l'architecture tridimensionnelle de son génome, notamment les contacts au sein de la chromatine, les 28 chromosomes, les compartiments, les boucles, les corpuscules de Barr et les superdomaines inactifs du chromosome X. Les compartiments génomiques actifs et inactifs de cette peau sont plus proches de ceux de la peau d'éléphant d’Asie que de tous les autres tissus d'éléphant.
Paléontologie
Spécimens fossilisés
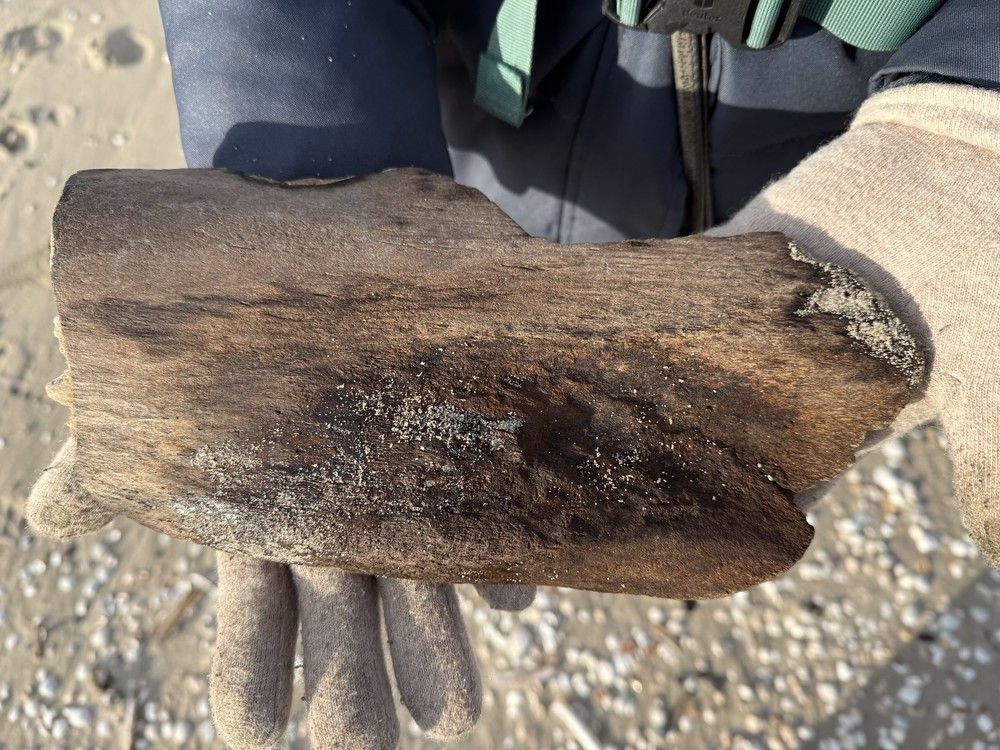
Des fossiles de mammouths laineux ont été trouvés dans différents types de dépôts, comme d'anciennes rivières et lacs ou le « Doggerland » en mer du Nord, qui était à sec durant l'ère glaciaire. De tels fossiles sont généralement incomplets et ne comprennent pas de tissus. Les accumulations de squelettes d'éléphants modernes sont connues sous le nom de « cimetière des éléphants », car on pensait que les vieux éléphants se rendaient dans ces lieux précis pour mourir. Des accumulations similaires d'os de mammouths ont été retrouvées, et on pense qu'il s'agissait d'animaux morts près ou dans des rivières sur des milliers d'années, et dont les os étaient transportés par le courant. Certaines accumulations pourraient également être les restes de troupeaux morts au même moment, peut-être à cause de crues. Les pièges naturels, comme les kettles, les dolines ou la boue, ont également piégé des mammouths sur des périodes de temps étalées.
Mis à part le cas des animaux congelés, les seuls restes de tissus connus sont ceux d'un spécimen qui a été préservé dans un suintement de pétrole à Starunia, en Pologne. Les mammouths laineux congelés ont été trouvés dans les parties les plus septentrionales de la Sibérie et de l'Alaska, avec beaucoup moins de découvertes dans ce dernier endroit. De telles découvertes sont généralement réalisées sous les terres du cercle Arctique, dans le pergélisol. Il apparaît que les tissus mous sont moins bien préservés sur des carcasses datant d'entre 30 000 et 15 000 ans avant notre ère, peut-être car le climat a été plus doux pendant cette période. La plupart des spécimens ont été partiellement dégradés avant leur découverte, du fait de leur exposition au soleil ou d'avoir été en partie consommés. Cette « momification naturelle » nécessite que l'animal soit très rapidement enseveli dans du liquide ou un matériel semi-solide comme de la cendre, de la boue ou de l'eau en partie gelée, et dans lequel il gèle.
La présence de nourriture non digérée dans l'estomac et de gousses de plantes encore dans la bouche de certains spécimens laisse à croire qu'ils ne sont probablement pas morts de faim ni de froid. La maturité de la végétation ingérée permet d'estimer la période de l'année à laquelle les animaux sont morts, généralement plutôt à l'automne qu'au printemps, quand on pourrait trouver des fleurs. Ces animaux ont pu tomber à travers la glace dans de petits étangs et y rester. Certains sont certainement morts dans des rivières, peut-être emportés par des crues. Près de la rivière Berelekh en Yakutie en Sibérie, plus de 8 000 os provenant d'au moins 140 mammouths ont été trouvés en un seul endroit, apparemment emportés par le courant.
Mammouths conservés dans la glace
Entre 1692 et 1806, seulement quatre descriptions de mammouths congelés ont été recensées en Europe. Aucun élément de ces animaux n'a été préservé, et aucun squelette complet n'a été retrouvé durant cette période. Tandis que les carcasses de mammouths laineux congelées ont été extraites par les Européens dès 1728, le premier spécimen décrit en détail a été découvert dans le delta de la rivière Léna en 1799 par Ossip Schumachov, un chasseur sibérien. Schumachov l'a laissé fondre jusqu'à ce qu'il puisse en retirer les défenses pour les vendre sur le marché de l'ivoire. En 1806, à Yakoutsk, Michael Friedrich Adams entend parler de cette découverte et se rend sur les lieux où il découvre que les carnivores sauvages avaient consommé la plus grande partie des organes et de la chair, dont la trompe. Il examine le mammouth et réalise que ce qu'il en reste constitue tout de même le plus complet découvert jusqu'alors. Mises à part les défenses déjà vendues, Adams récupère l'ensemble du squelette, une patte avant, la majeure partie de la peau et presque 18 kg de poils. Pendant son retour, il achète une paire de défenses qu'il pense être celles vendues par Shumachov. Adams apporte ces restes au musée zoologique de Saint-Pétersbourg où la tâche de reconstituer le squelette est confiée à Wilhelm Gottlieb Tilesius von Tilenau. Le Kunstkamera, le musée établi par Pierre le Grand, contenait un squelette d'éléphant d'Asie qui pouvait être utilisé comme référence. C'est l'une des premières tentatives de reconstitution de squelette d'un animal disparu. La reconstitution se révèlera correcte dans son ensemble, mais Tilesius inverse les défenses gauche et droite, qui se retrouvent ainsi incurvées vers l'extérieur et non vers l'intérie…
Relations avec l'Homme
Coexistence
Les humains ont coexisté avec le mammouth laineux durant le Paléolithique supérieur, quand l'Homme est arrivé en Europe en provenance d'Afrique. Avant cela, l'Homme de Néandertal a coexisté avec les mammouths durant le Paléolithique moyen : ils ont notamment utilisé les os de mammouths pour faire des outils et construire des matériaux. Le mammouth laineux était très important pour l'Homme durant l'ère glaciaire, car il était une source de nourriture, d'os, de graisse, de fourrure en quantités importantes. Les preuves de cette coexistence ont été découvertes durant le XIXe siècle. William Buckland publie sa découverte du squelette de la dame rouge de Paviland en 1823, qui a été retrouvé dans une grotte avec des os de mammouths, mais dans un premier temps il ne considère pas qu'ils sont contemporains. En 1864, Édouard Lartet découvre une gravure d'un mammouth laineux sur un morceau d'ivoire provenant de cet animal dans l'Abri de la Madeleine en Dordogne. Cette gravure est la première preuve largement acceptée de la coexistence de l'Homme avec des animaux préhistoriques éteints et est la première description contemporaine d'une telle créature pour la science moderne.
Le mammouth laineux est la troisième espèce la plus fréquemment dépeinte dans les peintures de l'âge de glace, après les chevaux et les bisons, et ces peintures ont été réalisées entre 35 000 et 11 500 ans avant notre ère. Aujourd'hui, plus de 500 représentations de mammouths laineux sont connues, sous la forme de peintures et gravures rupestres situées dans 46 grottes en Russie, France et Espagne, d'engravures et de sculptures (que l'on appelle « art mobilier ») dans de l'ivoire, du bois, de la pierre et des os. Les peintures rupestres de mammouth laineux existent dans plusieurs styles et tailles différents. La grotte de Rouffignac en France présente le plus grand nombre de représentations (159) et certains des dessins mesurent plus de 2 m de long. D'autres grottes notables présentent des représentations de mammouths comme la grotte Chauvet, la grotte des Combarelles et Font-de-Gaume. Une représentation dans la grotte du Castillo pourrait en fait représenter un Palaeoloxodon, l'« éléphant à défenses droites ».
L'art mobilier est plus facile à dater que les peintures dans des grottes car on les trouve dans les mêmes dépôts que des outils et d'autres objets datant de l'ère glaciaire. La plus grande collection d'objet d'art représentant des mammouths, comportant 62 représentations sur 47 plaques, a été découverte dans les années 1960 lors de fouilles sur le site de Gönnersdorf en Allemagne. Il ne semble pas y avoir de corrélation entre le nombre des mammouths dépeints et l'espèce qui était le plus fréquemment chassée, car les os de rennes sont les restes d'animaux les plus souvent retrouvés sur les sites de fouille. Deux propulseurs de lances en forme de mammouths laineux ont également été retrouvés en France. Certains objets n'ont pas été confectionnés là où ils ont été retrouvés, mais ont circulé par le biais du commerce de l'époque.
Utilisation par l'Homme
Les os de mammouths laineux ont été utilisés comme matériau de construction pour fabriquer des habitations par les Hommes de Néandertal comme les Hommes modernes durant l'ère glaciaire. Plus de 70 habitations de la sorte ont été retrouvées, principalement dans la plaine d'Europe orientale. La base de la hutte était circulaire, et avait une surface au sol de 8 à 24 m2. De gros os étaient utilisés pour constituer les fondations de la hutte, les défenses formaient l'entrée et le toit était certainement fait de peaux, tenues en place par des os et des défenses. Certaines huttes avaient un plancher qui allait 40 cm en dessous de la surface du sol. Certaines incluaient une place pour faire le feu, qui était alimenté avec des os, probablement du fait du manque de bois à cette période. Il est possible que certains des os utilisés comme matériaux provenaient de mammouths tués par l'Homme, mais l'état des os, et le fait que les os utilisés pour construire une même habitation pouvait avoir des milliers d'années de différence suggèrent qu'ils étaient souvent collectés dans les restes d'animaux morts depuis parfois longtemps. Les os de mammouth laineux étaient également utilisés pour fabriquer divers outils, objets et instruments de musique. Les gros os, comme les omoplates, étaient également utilisés pour recouvrir les corps humain durant les funérailles.
L'ivoire du mammouth laineux ét…
Extinction
La plupart des populations de mammouths laineux ont disparu durant la fin du Pléistocène et le début de l'Holocène, comme la plupart de la mégafaune du Pléistocène nord-américain (dont le mammouth de Colomb), ainsi que les extinctions ou extirpations de la faune associée aux steppes d'Eurasie qui coexistait avec les espèces de mammouths (comme le rhinocéros laineux, le lion des cavernes, le renne, le saïga, le renard arctique et le lemming des steppes). Cette extinction fait partie d'une vague d'extinction massive connue comme l'extinction du quaternaire, qui a commencé il y a 40 000 années en Australie et a culminé il y a entre 14 000 et 11 500 ans en zone holarctique.
Les avis scientifiques divergent quant à ses explications, attribuée à la chasse et/ou au changement climatique qui a entraîné une réduction de son habitat, sans que l'on sache lequel de ces facteurs a le plus pesé, ou si les deux ont été combinés. Quelle qu'en soit la cause, les grands mammifères sont généralement plus vulnérables que les petits car leurs populations sont moins importantes et leur taux de reproduction plus faible.
Les populations de mammouths laineux n'ont pas disparu simultanément, mais progressivement. La plupart ont disparu il y a entre 14 000 et 10 000 ans. La dernière population continentale connue vivait dans la péninsule de Kyttyk en Sibérie il y a 9 650 ans. Une petite population de mammouths laineux a survécu sur l'île Saint-Paul, en Alaska, jusqu'à il y a 6 400 ans. La toute dernière population connue a vécu isolée sur l'île Wrangel dans l'océan Arctique, jusqu'à il y a 4 000 ans, alors que la civilisation humaine était déjà avancée, et au moment de la construction de la pyramide de Khéops et du sphinx en Égypte antique.
L'ADN de restes de deux mammouths a été séquencé. L'un trouvé en Sibérie et daté d'il y a 44 800 ans et l'autre provenant de l'île Wrangel 4 300 ans avant notre ère. Ce travail a mis en évidence deux principaux temps de déclins de population : le premier remonte à 280 000 ans, auquel l'espèce a survécu, et un second il y a 12 000 ans, près du terme de l'ère glaciaire, qui a conduit à sa disparition.
Les mammouths de Wrangel se sont retrouvés isolés (durant 5 000 ans) par la montée du niveau de la mer. Du fait de la faible taille de la population en place quand l'île a été isolée, il y avait environ 300 à 1 000 individus sur l'île, impliquant une baisse de son hétérozygotie de l'ordre de 20 à 30 % et une perte de diversité de l'ADN mitochondrial de l'ordre de 65 %. La population semble pourtant être restée stable dans un premier temps, sans souffrir d'une baisse de diversité génétique supplémentaire.
Les études génétiques plaident pour une extinction ensuite soudaine, plutôt que résultant d'un déclin continu ; par ailleurs la date de disparition correspond à peu près à l'arrivée de l'Homme sur l'île. Les mammouths laineux de l'est de la Béringie (Alaska et Yukon actuels) ont disparu plus tôt, il y a 13 300 ans, peu de temps après (environ 1 000 ans) la première apparition de l'Homme dans la région, et au même moment que le reste des Proboscidiens de la fin du Pléistocène (mammouths, gomphothères et mastodontes), ainsi que la plupart de la mégafaune de l'Amérique. Par contre, les mammouths de l'île Saint-Paul ont apparemment disparu avant l'arrivée de l'Homme du fait de la réduction de leur habitat à la suite de la montée du niveau de la mer.
Une étude de 2008 a estimé que le changement climatique avait nettement réduit l'habitat convenant aux mammouths, passé de 7 700 000 km2 il y a 42 000 ans à 800 000 km2 il y a 6 000 ans. Les mammouths laineux avaient survécu à une diminution de leur habitat encore plus marquée à la fin de la glaciation du saalien il y a 125 000 ans, et il semble que l'Homme ait chassé et conduit à leur extinction les populations persistantes à la fin de la dernière période glaciaire. L'étude d'une piste datant d'il y a 11 300 à 11 000 ans dans le sud-ouest du Canada a montré que M. primigenius était en déclin tandis qu'il coexistait avec l'Homme, car il y avait moins de traces de jeunes que dans un troupeau normal.
Une étude récente (mars 2017, publiée par PLOS Genetics) a comparé la qualité du génome insulaire à celui de mammouths continentaux vivant il y a 45 000 ans. Le génome des individus insulaires contenait selon les généticiens un grand nombre de « mauvais gènes » (mutations délétères) et de codons anormaux susceptibles notamment d'avoir fait perdre à ces mammouths leu…
Galerie
Ajouter des photos
Partagez vos photos de cette espèce (jusqu'à 20 à la fois) : elles sont vérifiées automatiquement, puis publiées.
Répartition
Occurrences observées (données GBIF). Les zones hors aire d'origine peuvent indiquer une présence introduite ou invasive.
Sources et crédits
Informations provenant de plusieurs sources vérifiées. Dernière mise à jour : .
Crédits photos (6)
- Photo : Sjoerd Groos · CC BY-NC 4.0 · via GBIF
- Photo : Erwin Goutbeek · CC BY-NC 4.0 · via GBIF
- Photo : Arie Twigt · CC BY-NC 4.0 · via GBIF
- Photo : Arie Twigt · CC BY-NC 4.0 · via GBIF
- Photo : Tom Damm · CC BY-NC 4.0 · via GBIF
- Photo : diego jansen · CC BY-NC 4.0 · via GBIF
Mentions de licence
Texte disponible sous licence CC BY-SA 4.0. Il adapte notamment Mammouth laineux (Wikipédia, auteurs dans l’historique de l’article).
- Taxonomie : GBIF Backbone Taxonomy (CC BY 4.0)
- Carte : occurrences GBIF, fond © contributeurs OpenStreetMap (ODbL)
Détail : Sources et licences.
Discussion (0)
Aucun message pour l’instant. Lancez la discussion sur cette fiche (sources, précisions, débats éditoriaux).
Connectez-vous pour participer à la discussion.