Cristatelle
Cristatella mucedo
Cristatella mucedo, la Cristatelle, est une espèce de Bryozoaires (petits animaux aquatiques coloniaux).
- Règne
- Animalia
- Embranchement
- Bryozoa
- Classe
- Phylactolaemata
- Ordre
- Plumatellida
- Famille
- Cristatellidae
- Genre
- Cristatella
- Espèce
- Cristatella mucedo
Portrait
Cristatella mucedo est une espèce de la famille des Cristatellidae, dans l'ordre des Plumatellida.
Origines, phylogénie, paléontologie
Cet animal gélatineux et fragile se dégrade rapidement après sa mort et se fossilise donc très mal. Cependant, ses statoblastes, dont la forme est caractéristique se fossilisent plus facilement. De nombreuses fouilles, sondages et études limnologiques en ont mis au jour, par exemple dans les sédiments déposés durant les époques interglaciaires et depuis la dernière glaciation au Groenland ou au Canada.
Leur présence dans un sédiment récent ou dans une roche sédimentaire ancienne doit néanmoins être interprétée avec prudence, car munis de flotteur et pouvant s’accrocher aux oiseaux (exo-zoochorie), ou être ingérés par eux et voyager dans leur tube digestif (endozoochorie) ou être transportés par des poissons (endozoochorie) ou dispersé par des crues, leur nombre et leur abondance ne sont pas nécessairement représentatifs du nombre de colonies autrefois présentes à l’endroit où ils ont été trouvés.
Selon Massard et al. (2008), au sein du groupe Phylactolaemata, les espèces gélatineuses (Lophopodidae, Pectinatellidae, Cristatellidae) sont phylogénétiquement plus ancienne et primitives que le groupe Gymnolaemata et ses espèces tubulaires ramifiées (Plumatellidae, Fredericellidae).
Histoire scientifique de la découverte, description et classification de la Cristatelle
Très peu d'information sont disponibles sur le statut et la répartition de cette espèce avant que les naturalistes s’y intéressent de manière plus approfondie au XVIIIe et surtout au XIXe siècle.
Cet animal est assez remarquable pour ne pas passer inaperçu et là où il est présent peut aisément être observé à quelques centimètres sous la surface. Or, il n'a pas été mentionné par les naturalistes avant les années 1700, bien que ces derniers aient passé beaucoup de temps à étudier la faune et la flore des mares et des zones humides de toute l'Europe de l'Ouest et peu à peu de l'Amérique du Nord.
Ceci laisse supposer que l'espèce était rare ou peu commune dans une grande partie de sa vaste aire de répartition, et notamment dans les zones anthropisées.
Georges Cuvier lui-même, selon George James Allman, n'aurait pas pu se procurer d’exemplaires de C. mucedo pour sa description scientifique et sa classification, et il a dû comme plus d’une dizaine d’autres naturalistes après lui utiliser une description graphique faite par le peintre et illustrateur naturaliste allemand August Johann Rösel von Rosenhof dit « Roesel ». Et plus tard, Gervais écrit « les plumatelles sont beaucoup plus fréquentes que les cristatelles (...) Leurs œufs sont même connus depuis fort long-temps : Rösel les a pris pour des graines de lentilles d'eau, mais avant lui Bernard de Jussieu et M. de Réaumur avait déjà reconnu leur véritable nature » (ils avaient observé la "ponte" et « ont vu naitre des petits de ces œufs »).
Un autre indice de rareté réelle ou relative (comparativement aux autres bryozoaires) est qu’une espèce parente, bien plus petite et plus discrète plumatella repens décrite par Linnée en 1758 comme un bryozoaire dulcicole rampant était considérée comme abondante par les naturaliste (dont par Allman). Ce cernier quand il décrit C. mucedo prend la peine de lister les quelques lieux où l'animal a à sa connaissance pu être observé en Europe continentale : le lac de Lucerne, le Grand étang de Fontainebleau, près de Paris par Gervais et Turpin, en Belgique par Van Beneden et en Allemagne par Rösel) et dans les eaux insulaires de Grande-Bretagne par lui-même ou d'autres naturalistes (dans le réservoir d'eau d'un moulin à eau près de Little Baddow dans l'Essex, dans un beau lac subalpin près de Glandore dans le Comté de Cork, dans les lacs de Killarney, dans un lac situé près d'Armagh et dans plusieurs autres localités irlandaises (GJA), le lac de Duddingston à Duddingston près d'Édimbourg, le lac de Coldingham à Berwick, une mare de jardin à Binns House dans le Linlithgowshire où l’espèce a été trouvée par JG Dalyell. L'espèce nous dit-il a aussi été observée dans le « canal de l'Union » (construit de 1818 à 1822, sur 50,7 km et sans écluse pour relier le bassin d'Édimbourg à celui de Falkirk) et dans le Grand Canal (Irlande) de Dublin. Cette information est rétrospectivement intéressante, car elle montre la capacité de ce bryozoaire à rapidement coloniser des milieux aquatiques artificiels créés par l'homme.
Durant un siècle ce sont encore les mêmes illustrations ou d’autres faites d’après les premières, plus ou moins bien recopiées sous forme de gravures ou de lithographies qui ont servi à illustrer les articles scientifiques ou de vulgarisation concernant l’espèce et le genre. Rösel a notamment fait de remarquables dessins scientifiques d’amphibiens, et pour mieux observer les animaux avait l’habitude d’emporter des œufs ou larves et de les élever chez lui, ce qui lui permettait d'étudier leurs développements et leurs métamorphoses. C’est peut-être ainsi qu’il a pu découvrir l’espèce et ensuite, après une observation attentive, produire la première planche de dessin naturaliste présentant C. mucedo, espèce qui a rapidement fasciné de nombreux naturalistes.
Le premier spécimen adulte "parfait" aurait été décrit par le naturaliste écossais John Graham Dalyell (1775-1851) en 1834 à partir d’un individu découvert dans les années 1830 près d'Edinbourgh, et présentant une forme et des caractéristiques différentes de celles correspondant aux descriptions faites jusqu'alors. Dalyell nomme alors l’animal qu’il décrit Cristatella mirabilis et le décrit clairement comme appartenant aux espèces « rares et remarquables » d'Écosse.
En France, le zoologiste français Henri Frédéric Paul Gervais en décrit ensuite un autre spécimen colonial mature. De son côté Allman recherche activement l'espèce en Grande-Bretagne, et en découvre d’autres spécimens …
Nomenclature
Le nom valide complet (avec auteur) de ce taxon est Cristatella mucedo Cuvier, 1798.
Étymologiquement, le nom de genre cristatella provient du latin crista (« crête ») avec le suffixe diminutif -elle. Cuvier justifie ce nom par la présence « sur la bouche [d']une espèce de plumet formé par des tentacules portés sur une tige commune, et rangés parallèlement ou en pinceaux ». L'épithète spécifique mucedo provient du latin muceo (« moisir »), Cuvier expliquant que « les cristatelles habitent les eaux stagnantes, et leurs amas ne paroissent à l'œil nud que comme des taches de moisissure. »
Synonymie
Jusqu’à ce que son nom soit fixé (sous réserve de nouvelle dénomination à la suite des avancées de la taxonomie), les naturalistes l’ont nommée :
- Cristatella vagans (Lamsk en 1816, Schweiger en 1820 et Lamouroux en 1824, Golfuss en 1824, De Blainville en 1834, Lamark en 1836 ;
- Alcyonella, secundus evolutionis gradus, par Raspail en 1828 ;
- Cristatella mirabilis en 1834, par Dalyell.
Désignations en français
Cristatella mucedo porte en français le nom normalisé et vulgarisé « Cristatelle », donné par Cuvier en 1798 lors de sa description formelle du genre et translittération du latin. Cette espèce étant monophylétique, ce nom sans épithète est suffisant pour la désigner. Cuvier lui donne néanmoins le nom spécifique « Cristatelle moisissure », traduction de son nom scientifique. Cette désignation est par la suite reprise Allman et Gervais en 1840, sans qu'elle soit vraiment popularisée.
En français, Cuvier nomme également le genre Cristatella les « Polypes à plumets ».
Distribution
Cette espèce est trouvée en Europe du Nord et de l'est dont au Royaume-Uni, Norvège, Finlande et aux Pays-Bas du niveau de lamer jusqu’à 1 116 m d’altitude (record enregistré en Norvège lors d’une étude de près de 20 ans ayant porté sur l’inventaire de 601 lacs), ainsi que dans le Nord-Est de l’Amérique du Nord et au Canada.
Elle a été signalée au Japon dans les années 1930.
Description
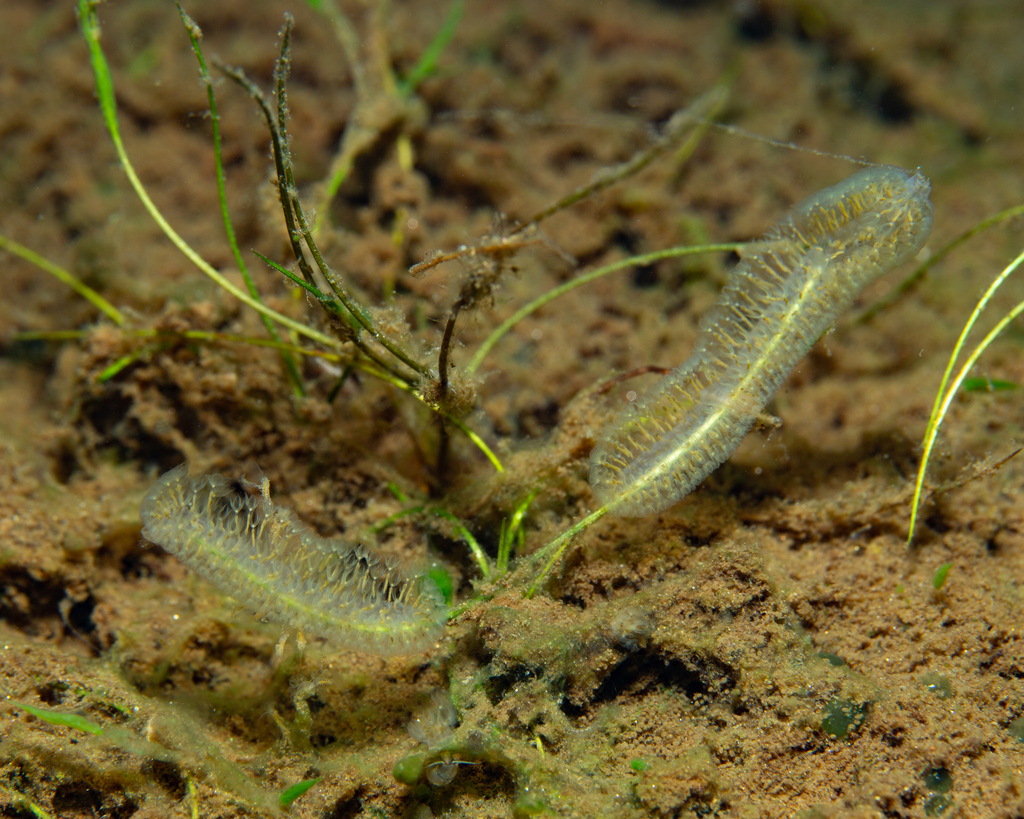
Cristatella mucedo, la Cristatelle, est une espèce de Bryozoaires (petits animaux aquatiques coloniaux). Cet invertébré filtreur est l'unique représentant de la famille des Cristatellidae et du genre Cristatella. De loin, la forme et l'aspect d'une colonie mature évoquent celle d’une chenille translucide et velue (sauf pour la partie inférieure qui évoquerait plutôt le pied d’un gastéropode). La colonie, presque cylindrique, est formée de 2 à 3 rangées de polypes alignés formant au niveau de leurs bases un espace ouvert partagé. Elle est issue d’un élément fondateur ; elle prend d’abord une forme arrondie de quelques millimètres de large, puis elle s’allonge peu à peu sur deux côtés pour former une sorte de tube couvert de polypes d’un côté, et formant un pied gélatineux de l’autre. Elle est presque entièrement transparente, hormis le tube digestif (bleuté à brunâtre selon la nourriture ingérée), le coenoecium (légèrement jaunâtre à brun clair). Dans la colonie, on distingue des points opaques brun-noir et bien visibles quand ils arrivent à maturité ; ce sont les statoblastes (forme dormante de l'espèce ; ils sont ronds, flottent sur l’eau et leur périphérie est dotée de filaments se terminant chacun par une sorte de minuscule grappin muni d'un ou deux crochets). Les colonies, qui peuvent très lentement se mouvoir, sont souvent trouvées sur des branches immergées ou sur des rhizomes de plantes. Sur les branches ou certains substrats durs ou des branches immergées, elles forment parfois des groupes évoquant une succession de chenilles processionnaires, longues d’environ 5 cm pour les plus grandes des unités coloniales. Exceptionnellement les individus peuvent former un « tapis » (zoarium) couvrant parfois entièrement une pierre ou un objet dur qui prend alors l'apparence d'un morceau de récif corallien couvert de polypes ouverts. Tous les individus meurent en fin d'automne, mais chaque colonie produit à ce moment des dizaines de propagules très résistantes susceptibles de former une nouvelle colonie au printemps suivant. Ce bryozoaire vit dans les eaux douces, plutôt lentes, où il se nourrit de microplancton et de particules en suspension. Il est réputé préférer les eaux fraîches de la zone holarctique. Cristatella mucedo est l'une des 8 000 espèces environ de bryozoaires connus dans le monde et l’une des rares espèces d'eau douce (environ une espèce de bryozoaire sur mille vit en eau douce, presque tous appartenant à la classe des Phylactolaemata qui regroupe des espèces ne vivant qu'en eau douce). Elle est l'unique espèce du genre Cristatella, un genre décrit par Georges Cuvier en 1798 dans son ouvrage Tableau élémentaire de l'histoire naturelle des animaux. Cette espèce d’abord décrite par Rösel n’a pu être mieux étudiée que des décennies plus tard, notamment par le naturaliste irlandais George James Allman qui a consacré une partie de sa vie aux bryozoaires d’eau douce[réf. nécessaire].
Capacité de dispersion
Bien que les jeunes individus et les entités coloniales aient de très faibles capacités de dispersion active (elles se mesurent en cm ou quelques cm par jour au mieux), cette espèce dispose d’importantes capacités de dispersion passive (centaines à milliers de km en quelques jours à semaines) :
- hydrochorie : des individus coloniaux accrochés à une branche immergée emportée par le courant ou une crue peuvent être transportés et se reproduire en aval, mais ceci n’expliquerait pas la très large répartition géographique des individus au sein des sous-populations et de la métapopulation de l’espèce.
- Ornithochorie : Selon Bourgogne-Nature, « Il a été vérifié que le transit intestinal n’altérait pas le pouvoir germinatif des statoblastes, mais on peut cependant faire remarquer que la durée du transit est brève chez bien des oiseaux, et donc la longueur du trajet courte, alors que l’exo-ornithochorie permet sans aucun doute des déplacements sur de bien plus longues distances » voir page 7/11; Une hypothèse était donc que les oiseaux d’eau puissent transporter des statoblastes sur de très grandes distances (de même que pour des crustacés cladocères tels que Daphnia ambigua, Daphnia laevis et Sida crystallina qui tous produisent des propagules très résistantes à la dessiccation et qui montrent une capacité remarquable à coloniser rapidement de nouveaux milieux isolés) ; Cette hypothèse semble pouvoir être confirmée par les résultats d’une étude publiée en 2005. Cette étude a porté sur les distances génétiques entre populations géographiquement dispersées dans toute l’Amérique du Nord. Elle a conclu que les distances génétiques observées peuvent effectivement être, au moins en grande partie, expliquée par les corridors de migration aviaire (les trajets et mouvements des oiseaux aquatiques migrateurs) en Amérique. Le sort de cette espèce pourrait donc aussi être lié à l’état des populations d’oiseaux qui les transportent ; toute disparition ou régression significative de certains oiseaux d’eau fréquentant les habitats de C mucedo (en raison d’effets dus à la chasse par exemple, car beaucoup de ces oiseaux sont aussi des espèces-gibiers), ou toute modification importante de l’aire de répartition de ces oiseaux (en raison du dérèglement climatique par exemple) pourraient avoir des effets collatéraux sur C mucedo. Dans d’autres cas, les activités humaines semblent aussi expliquer le recul ou parfois les avancées ou changements d’aire d’autres espèces de bryozoaires. L’eutrophisation ou le creusement de canaux entre différents bassins versants pourrait localement avoir favorisé le développement de certaines populations de C. mucedo.
- Une autre hypothèse est que des poissons pourraient ingérer des statoblastes et que ces derniers pourraient parfois résister à la digestion et être alors transportés vers l’amont ou l’aval si les poissons sont « migrateurs » en dévalaison ou en remontée.
Ces capacités de dispersion expliquent le fait, noté par Darwin en 1859, que les bryophytes d'eau douce montrent une étonnante capacité à coloniser des milieux apparemment isolés et physiquement déconnectés les uns des autres ; ces capacités ont une grande importance à moyen et long terme pour les flux de gènes et les divergences évolutives et à court terme pour les phénomènes de (re)colonisation et de résilience écologique.
Génétique, variations du génome et diversité génétique
Bien que l’essentiel de la reproduction des polypes et colonies est clonale, une diversité génétique significatives a été signalée entre toutes les populations étudiées. Les progrès récents des outils de biologie moléculaire ont permis de trouver que chez les bryozoaires (et notamment chez C. mucedo pour la première fois en 1994) des preuves génétiques directes de fécondation croisée, même si celle-ci ne semble générer que de faibles niveaux de variation génétique au sein des populations d’un même site qui sont très clonales. La première explication de la variété génétique de la Cristatelle et d’autres bryozoaires reste donc la capacité de dispersions à grande distance que lui confère la production d’un grand nombre de statoblastes, qui joue probablement un rôle majeur dans l’entretien de cette diversité.
La Cristatelle a récemment fait l’objet d’études génétiques relativement poussées (études des microsatellites et séquences mitochondriales de gènes) en Europe et en Amérique du Nord.Les gènes mitochondriaux montrent l’existence de nombreuses lignées divergentes, qui en Amérique du Nord semblent pouvoir être classées en deux grands groupes au sein de la métapopulation étudiée. Un premier groupe est génétiquement relativement homogène et contient des haplotypes assez similaires à ceux observés en Europe, alors que le second groupe est plus hétérogène et éloigné des génomes européens, avec une divergence relativement récente (au regard des rythmes de l’évolution), qui pourrait remonter selon les données disponibles à environ 1,5 million d’années avant nos jours.
Selon les données disponibles, les populations européennes ne renfermeraient que trois haplotypes, étroitement liés entre eux. Les niveaux de variation génétique intra-population sont comparables en Amérique du Nord et en Europe, cependant les données microsatellites révèlent une diversité génétique nettement plus élevée en Amérique du Nord qu'en Europe, peut être en partie en raison des effets différents des dernières glaciations, mais la combinaison des données mitochondriales et microsatellites suggère aussi que ces deux grandes lignées nord-américaines, génétiques nettement distinctes pourraient représenter deux espèces cryptiques ; les hybridations entre ces deux quasi-espèces expliqueraient alors (au moins partiellement) des niveaux élevés de diversité génétique en Amérique du Nord.
Habitats
C’est une espèce qui est réputée associée aux eaux plutôt fraiches et aux climats froids à tempérés.
On a récemment montré qu’existent néanmoins des variants génétiques différents (en Amérique du Nord), dont certains pourraient être adaptés à des milieux légèrement différents.
En Europe, selon une étude norvégienne réalisée de 1960 à 1978 sur 601 lacs du niveau de la mer au niveau des montagnes, C. Mucedo supporte les hivers très froids bien qu’un peu moins que P. articulata et peut être trouvé dans des environnements variés, mais avec une préférence marquée pour les lacs situés à une altitude moyenne, avec une eau plutôt chaude en été, un faible effet des vagues, un taux moyen à élevé de calcium en solution, un taux moyen de magnésium, une eau légèrement acide et moyennement turbide.. C. mucedo semble indifférente au niveau trophique (à condition d’avoir assez de calcium et magnésium), mais évite les lacs d’altitude très froids et les lacs acides ou acidifiés (l’espèce n’est pas retrouvée dans les eaux dont le pH est sous 5.4) ni dans les lacs dont l’eau est trop limpide (limpidité associée à l’absence de nourriture nécessaire aux bryozoaires). Selon Allman, ces animaux vivent dans des eaux de « lacs et de mares, sur la partie supérieure de pierres submergées, et sur les rhizomes de plantes aquatiques où elles glissent lentement, se complaisant dans la lumière du soleil ». Selon certains auteurs, ils peuvent être trouvés dans des habitats lentiques et parfois lotiques, et peuvent aussi coloniser des masses d’eaux récemment constituées dans des gravières ou fonds de carrières (par exemple dans l'ancienne carrière dite le « lac bleu » à Rœux.
Une étude des populations de bryozoaires de la rivière Sûre au Luxembourg, a mis en évidence que les groupes de cristatelles étaient centrées sur le lac de barrage du barrage de la haute-Sûre (comme Plumatella fungosa) ou juste à son aval alors que d'autres bryozoaires (Plumatella repens ou Plumatella emarginata étaient présentes respectivement sur la totalité et presque totalité du cours d'eau, ce qui laisse supposer que la Cristatelle apprécie les eaux ralenties (lentiques) et/ou bénéficiant d'une bonne inertie thermique. Cette même étude montre que l'espèce semble avoir disparu, de même que toutes les autres espèces de bryozoaires d'une section de la rivière, où la seule explication trouvée était la pratique intense de la baignade et du canotage près d'une zone touristique et de camping.
Biologie
Cette espèce vit selon un cycle annuel, et forme des colonies dites “ statoblastiques” et semble à la fois adaptée à des habitats lentiques (ex : lacs, eau ralentie par un barrage) et relativement lotiques (canal, petit cours d'eau) qui meurent en hiver en laissant les statoblastes qui constituent pour les bryozoaires d’eau douce un stade de dormance hivernal.
Son organogenèse et son système nerveux (dès le début du XXe siècle) et en particulier ses neurones très primitifs, ont fait l’objet d’études.
Alimentation
Comme tous les bryozoaires, la cristatelle est microphage. Elle filtre l'eau grâce aux tentacules ciliés de ses lophophores qui amènent ensuite les particules retenues vers sa bouche.
Cette espèce pourrait ainsi dans une certaine mesure contribuer à l'autoépuration des eaux.
Allman remarque aussi qu’à la différence de la plupart des autres bryozoaires d’eau douce, C. mucedo laisse la plupart du temps ses tentacules en extension, en position ouverte étendue dans l’eau. Si un contact ou un stress provoque le retrait du panache de ce tentacule dans la cellule, il en ressort aussitôt « dès la gêne passée »...
Motilité
Selon Allman, en captivité, les grands individus coloniaux se déplacent peu et « avec réticence », mais les individus plus petits (un peu plus de 1 cm) peuvent parcourir jusqu’à plus de 10 cm par jour le long des parois du bocal où ils sont maintenus.
Selon Allman, ils préfèrent se maintenir près de la surface et semblent apprécier la lumière (mais dans la nature on trouve parfois des colonies denses à plus d’1 m de profondeur dans une eau très turbide, toutefois du côté le plus éclairé des substrats durs qu’ils colonisent).
La colonie ne possède pas de cerveau, et on ignore encore les principes qui guident cet ensemble de polypes dans leur déplacement (le long d’une tige, d’une paroi ou sur objet). De nombreux auteurs signalent une forme d’attirance pour la lumière.
Reproduction
Les polypes sont hermaphrodites et une reproduction sexuée est possible via la spermatogenèse et une fécondation croisée des ovaires, mais elle est minoritaire : la colonie se reproduit principalement de manière clonale.
Elle produit en outre des propagules (les « statoblastes », qui résultent aussi d’une multiplication asexuée). Les statoblastes sont chez cette espèce, de grande taille. Ils ont une forme de soucoupe volante, et abritent du matériel germinatif. Ils sont entourés d’un « anneau pneumatique » périphérique (flotteur) qui leur permet de flotter et de se disperser dans l'eau ; ce sont des flottoblastes. Quelque statoblastes resteront « collés » à leur colonie-mère (on les nomme sessoblaste)
Le statoblaste est constitué de deux « valves », l'une dorsale, l'autre ventrale, réunies par suture. Les statoblastes qui sont formés de la fin du printemps à l’été peuvent être libérés par la désagrégation accidentelle partielle ou totale de la colonie. Durant l'automne, toutes les colonies meurent et se décomposent en libérant les très nombreux statoblastes qu’elles contiennent. Ces derniers hiverneront en état de quiescence puis « germeront » dès que la température de l'eau remontera suffisamment. Une phase de reproduction sexuelle intervient ensuite : les colonies peuvent libérer des larves (juillet, août) qui après avoir d'abord nagé librement dans l'eau, se fixent après métamorphose pour former de nouvelles colonies (reproduction sexuée). Ces colonies bien que plus jeunes, tout comme leurs colonies parentales produiront aussi des statoblastes qui assureront la reproduction asexuée de l'espèce.
Dynamique des populations
Selon les données disponibles sur les patterns écopaysagers de répartition de l’espèce et sur les caractéristiques abiotiques (physicochimie) des sites, ou selon les données acquises via des analyses génétiques ou des expérimentations de transplantation, il semble qu’à l’échelle d’un bassin naturel, l’espèce forme des populations locales fortement clonales, qui constituent une métapopulation.
On suppose que cette structure évolue très peu du printemps à l’automne, mais elle peut évoluer via les mouvements de statoblastes d’une année sur l’autre. Les qualités physicochimiques de l’eau ne sont pas prédictives de la présence/absence de l’espèce. Il est fréquent que des sites a priori favorables demeurent inoccupés.
Des phénomènes d’extinction et de recolonisation de sous-population au sein d’une métapopulation sont observés et encore mal compris.
Une faible part des colonies produis…
Galerie
Ajouter des photos
Partagez vos photos de cette espèce (jusqu'à 20 à la fois) : elles sont vérifiées automatiquement, puis publiées.
Répartition
Occurrences observées (données GBIF). Les zones hors aire d'origine peuvent indiquer une présence introduite ou invasive.
Sources et crédits
Informations provenant de plusieurs sources vérifiées. Dernière mise à jour : .
Crédits photos (3)
- Photo : Alex Shure (@alex_shure) · CC BY-NC 4.0 · via iNaturalist
- Photo : Robby Deans (@hydaticus) · CC BY-NC 4.0 · via iNaturalist
- Photo : Dmitry Kuzmenckin (@kuzmenckin) · CC BY-NC 4.0 · via iNaturalist
Mentions de licence
Texte disponible sous licence CC BY-SA 4.0. Il adapte notamment Cristatella mucedo (Wikipédia, auteurs dans l’historique de l’article).
- Taxonomie : GBIF Backbone Taxonomy (CC BY 4.0)
- Carte : occurrences GBIF, fond © contributeurs OpenStreetMap (ODbL)
Détail : Sources et licences.
Discussion (0)
Aucun message pour l’instant. Lancez la discussion sur cette fiche (sources, précisions, débats éditoriaux).
Connectez-vous pour participer à la discussion.